東京大学 理学系研究科 生物科学専攻 2024年8月実施 第4問
Author
祭音Myyura (co-authored with GPT 5.6 SOL)
Description
次の文 1〜文 3 を読み、以下の問 1〜9 に答えよ。
<文 1>
真核生物において、タンパク質をコードする遺伝子の数は、ゲノムのサイズ(ヌクレオチド数)によらず、数千〜数万の範囲に収まっている(図 1)。しかし、この遺伝子の数は固定的に維持されているわけではなく、進化の過程では、遺伝子の喪失や獲得が繰り返し起こっている。ゲノムが新しい遺伝子を獲得する機構には、(a)遺伝子重複や遺伝子水平伝播などがある。
生物のゲノム配列には太古から現在に至る生命の進化の歴史が刻まれている。例えば、(b)様々な生物種について相同遺伝子の配列を比較することで、種の系統関係を推定することができる。
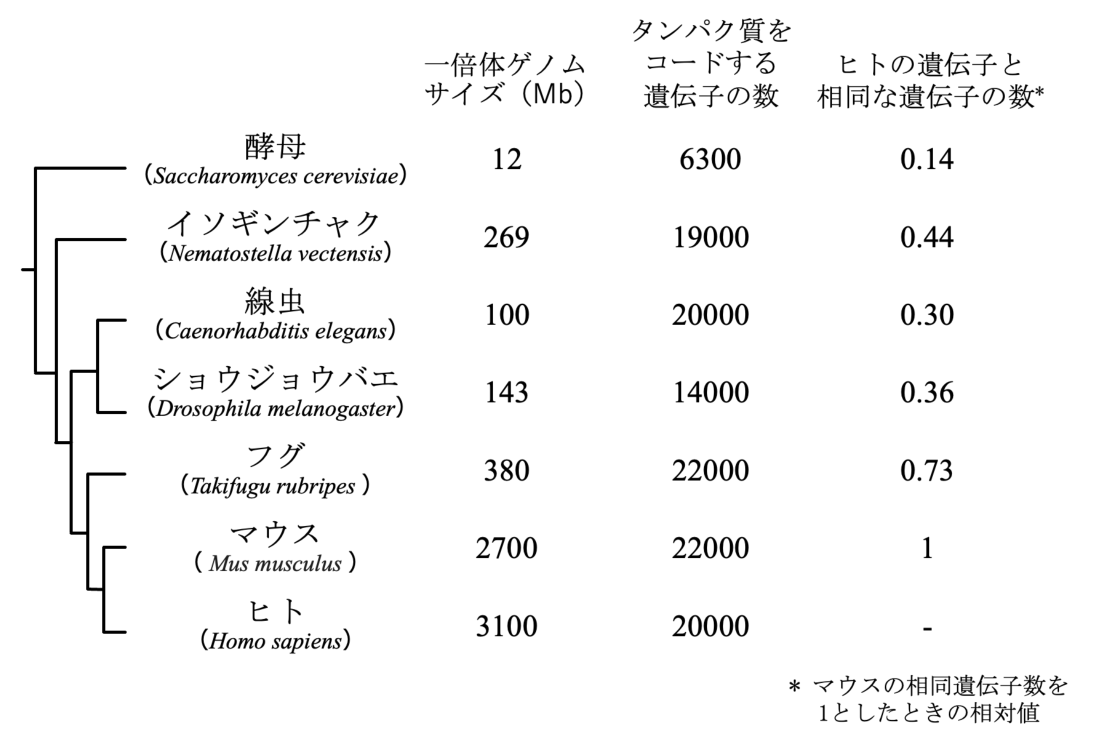
図 1. 真核生物各種における、ゲノムの大きさ、おおよその遺伝子数、およびヒトの遺伝子と相同な遺伝子の数(相対値)。左端には系統関係を示す。Putnam et al., Science, 2007 より改変。
問 1. 下線部(a)について。新たに生じた重複遺伝子は、やがてどのような運命をたどるか。進化の過程で、重複した遺伝子に起こると予測される現象を 2 つ挙げ、それぞれ 2 行程度で説明せよ。
問 2. 下線部(b)について。種の系統関係を再構築するとき、相同遺伝子のオルソログ遺伝子とパラログ遺伝子のうち、どちらを使用すべきか。それぞれの遺伝子の特徴を説明した上で、3 行程度で答えよ。
問 3. 図 1 について。意外なことに、二胚葉性のイソギンチャクの方が、三胚葉性であるショウジョウバエや線虫よりも、ヒトの遺伝子と相同な遺伝子を多くもっている。また同様に、脊椎動物で高度に保存されているタンパク質ドメインもイソギンチャクの方が多くもっている。これらの理由として考えられる可能性を挙げ、3 行程度で考察せよ。
<文 2>
一般に動物は化合物 X を合成することができない。しかし 2 種のアブラムシ(カメムシ目に属する昆虫)から抽出した DNA から、X の生合成経路に含まれる酵素の 1 つであるタンパク質 Y をコードする遺伝子 の配列が PCR により増幅された。当初は DNA サンプルに他の生物の DNA が混入した可能性も疑われたが、検討の結果、(c)確かにアブラムシのゲノムに遺伝子 が存在し、アブラムシの系統のみで遺伝子水平伝播で獲得されたものであると推論された。
問 4. 下線部(c)について。この推論に矛盾しない記述を、次の(ア)〜(ウ)から全て選べ。
- (ア)完全に無菌化したアブラムシから抽出した DNA を用いると、遺伝子 の配列は PCR で増幅されない。
- (イ)昆虫以外の節足動物の一部で、ゲノム上に遺伝子 の存在が確認され、系統解析を行うと、アブラムシのサンプルから増幅された遺伝子 と単系統群となる。
- (ウ)アブラムシの遺伝子 の配列の近傍に、化合物 X の生合成経路に含まれる別の酵素をコードする遺伝子の配列が存在する。
[実験 I]
このアブラムシの遺伝子 の進化的背景を明らかにするため、アブラムシ 2 種のほか、植物、細菌、真菌類からこの遺伝子を単離し、タンパク質 Y のアミノ酸配列を決定して比較した(表 1)。
表 1. タンパク質 Y の部分アミノ酸配列における種間の違い(異なるサイトの数の割合)
| Acyrthosiphon pisum | Myzus persicae | Ustilago maydis | Gibberella fujikuroi | Staphylococcus aureus | Pantoea agglomerans | Arabidopsis thaliana | |
|---|---|---|---|---|---|---|---|
| Acyrthosiphon pisum | 0 | 0.02 | 0.33 | 0.39 | 0.58 | 0.65 | 0.71 |
| Myzus persicae | — | 0 | 0.33 | 0.39 | 0.58 | 0.65 | 0.71 |
| Ustilago maydis | — | — | 0 | 0.32 | 0.58 | 0.58 | 0.67 |
| Gibberella fujikuroi | — | — | — | 0 | 0.54 | 0.56 | 0.69 |
| Staphylococcus aureus | — | — | — | — | 0 | 0.58 | 0.69 |
| Pantoea agglomerans | — | — | — | — | — | 0 | 0.69 |
| Arabidopsis thaliana | — | — | — | — | — | — | 0 |
Acyrthosiphon pisum、Myzus persicae:アブラムシ。Ustilago maydis、Gibberella fujikuroi:真菌類。Staphylococcus aureus、Pantoea agglomerans:細菌。Arabidopsis thaliana:植物。
問 5. 表 1 の結果を用いて遺伝子 の分子系統解析を行うと、どのような系統関係が推定されるか。正しい系統関係を反映している遺伝子系統樹を次の(ア)〜(エ)から全て選べ。
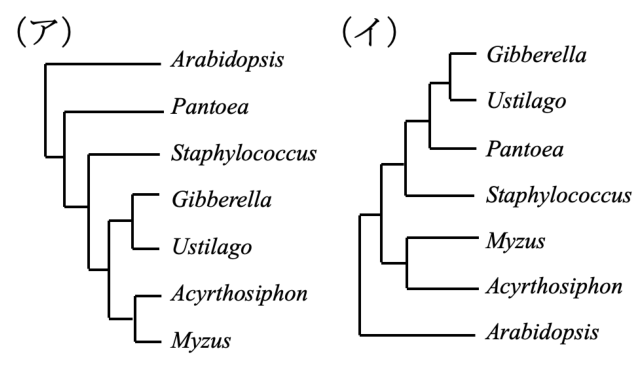
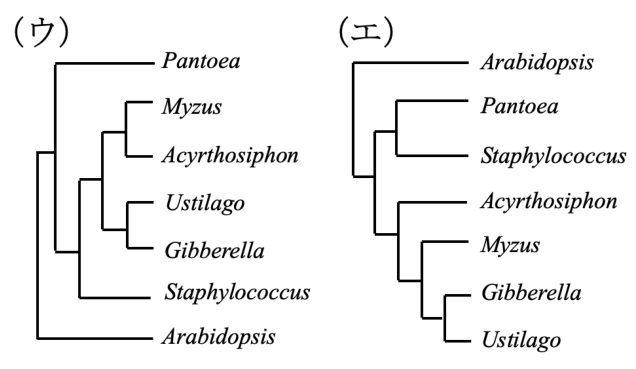
*全て距離行列法(UPGMA)で系統樹を作成している。
問 6. 問 5 で推定した系統関係から、アブラムシにおける遺伝子 の進化的背景、特に獲得した時期と遺伝子 の起源となった生物がもつアブラムシとの生態的関係について、3 行程度で考察せよ。
<文 3>
ある二倍体生物の常染色体上の遺伝子座 には、アレル(対立遺伝子) とアレル が存在する。この生物の 2 つの集団について考える。集団 1 はサイズが非常に大きく、遺伝子座 は (d)ハーディ・ワインベルグ平衡状態にあるとする。集団 2 では、単位時間当り の割合()の個体が集団外に移動し、同数の個体が集団 1 から移動してくる。そのため、集団 2 のサイズは変化しないが、アレル の頻度は時間とともに変化する。
問 7. 下線部(d)について。集団 1 におけるアレル の頻度が 0.4 であるとき、集団 1 の遺伝子型 の頻度を求めよ。
問 8. 集団 1 のアレル の頻度を とする( は定数)。時刻 0 における集団 2 のアレル の頻度を 、時刻 0 から 単位時間経過した時刻 における集団 2 のアレル の頻度を とする。ここで、 は正の整数とし、時間経過については離散的に扱う。また、集団 2 において、個体の移動以外の要因でアレル の頻度が変化することはないものとする。次の(1)と(2)に答えよ。
(1) を、、、 を用いて表せ。
(2) を、、、、 を用いて表せ。
問 9. 集団 2 のアレル の頻度は、時間が経過すると( とすると) に近づくと期待される。しかし、遺伝的浮動の効果により、集団 2 のアレル の頻度は、 以外の値も取りうる。図 2 は、、 と仮定し、遺伝的浮動の効果まで考慮して、理論的計算によって求めた平衡状態における集団 2 のアレル の頻度の確率密度分布(平衡頻度分布)である。次の(ア)、(イ)、(ウ)のうち、最も大きな集団サイズを仮定したのはどれか。また、そのように考えた理由について、3 行程度で述べよ。
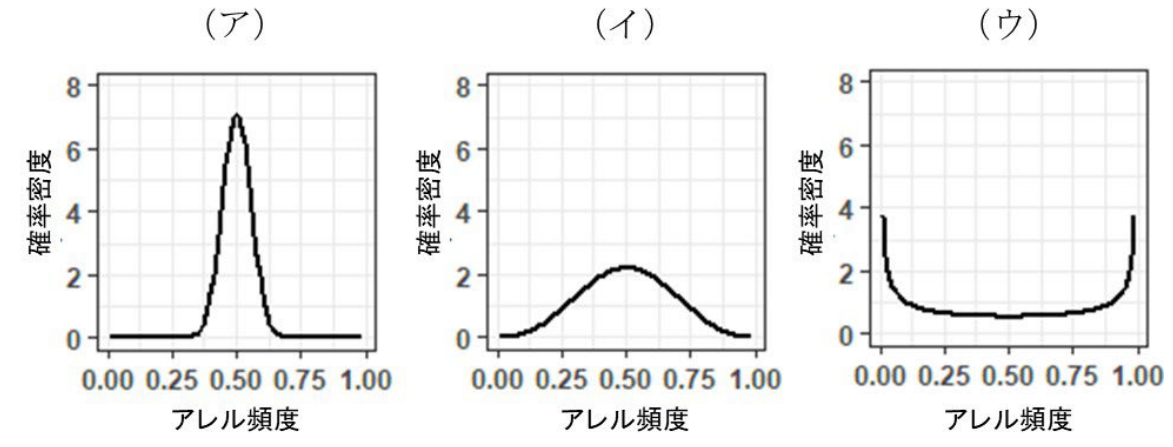
図 2. 集団 2 におけるアレル の平衡頻度分布。
题目描述
阅读文章 1~3,回答问题 1~9。
<文章 1>
真核生物中,编码蛋白质的基因数不随基因组大小(核苷酸数)而定,而处于几千至几万的范围内(图 1)。但基因数并非始终固定,在进化过程中反复发生基因的丢失与获得。基因组获得新基因的机制包括 (a)基因重复和基因水平转移等。
生物的基因组序列记录了从远古至今的生命进化史。例如,(b)通过比较不同物种的同源基因序列,可以推断物种间的系统发育关系。
图 1 给出了各类真核生物的单倍体基因组大小(Mb)、大致的蛋白质编码基因数,以及与人类基因同源的基因数(以小鼠的同源基因数为 1 的相对值)。最左侧为系统发育关系。图中自上而下为酵母、海葵、线虫、果蝇、河豚、小鼠和人;数据及树形见上方原图。该图改自 Putnam et al., Science, 2007。
问 1. 关于画线部分(a),新产生的重复基因最终可能有什么命运?列举进化过程中预计会发生在重复基因上的两种现象,各用约 2 行解释。
问 2. 关于画线部分(b),重建物种间的系统发育关系时,应使用同源基因中的直系同源基因还是旁系同源基因?说明两者各自的特点后,用约 3 行回答。
问 3. 关于图 1,令人意外的是,两胚层的海葵比三胚层的果蝇和线虫拥有更多与人类基因同源的基因。同样,在脊椎动物中高度保守的蛋白质结构域,海葵也拥有更多。提出可能的原因,用约 3 行讨论。
<文章 2>
动物通常不能合成化合物 X。然而,从两种蚜虫(属于半翅目的昆虫)提取的 DNA 中,通过 PCR 扩增出了基因 的序列。该基因编码蛋白质 Y,后者是 X 的生物合成途径中的一种酶。起初曾怀疑 DNA 样品受到其他生物 DNA 的污染,但经研究推断,(c)蚜虫基因组中确实存在基因 ,且仅在蚜虫谱系中通过基因水平转移获得。
问 4. 关于画线部分(c),从(ア)~(ウ)中选择所有不与该推断矛盾的叙述。
- (ア)使用从完全无菌化的蚜虫中提取的 DNA,不能通过 PCR 扩增出基因 的序列。
- (イ)在昆虫以外的部分节肢动物基因组中确认存在基因 ;系统发育分析显示,它们与从蚜虫样品中扩增的基因 构成单系群。
- (ウ)在蚜虫基因 序列附近,存在编码 X 生物合成途径中另一种酶的基因序列。
[实验 I]
为阐明蚜虫基因 的进化背景,除两种蚜虫外,还从植物、细菌和真菌中分离该基因,测定并比较蛋白质 Y 的氨基酸序列(表 1)。表 1 的数值为蛋白质 Y 部分氨基酸序列在物种间的差异,即不同位点数的比例。前两种为蚜虫,接着两种为真菌,再接着两种为细菌,最后一种为植物。
问 5. 利用表 1 的结果对基因 进行分子系统发育分析,会推断出怎样的系统发育关系?从上方(ア)~(エ)的基因树中选择所有正确反映该关系的树。所有树均采用距离矩阵法 UPGMA 构建。
问 6. 根据问 5 推断的系统发育关系,用约 3 行讨论蚜虫基因 的进化背景,特别是获得该基因的时期,以及作为基因 来源的生物与蚜虫之间的生态关系。
<文章 3>
某二倍体生物常染色体上的基因座 存在等位基因 与 。考虑该生物的两个种群。种群 1 非常大,基因座 处于 (d)哈代—温伯格平衡状态。种群 2 每单位时间有比例为 ()的个体迁出,同时有同样数量的个体从种群 1 迁入。因此,种群 2 的大小不变,但等位基因 的频率随时间变化。
问 7. 关于画线部分(d),若种群 1 中等位基因 的频率为 0.4,求种群 1 中基因型 的频率。
问 8. 设种群 1 中等位基因 的频率为常数 。种群 2 中等位基因 在时刻 0 的频率为 ,从时刻 0 起经过 个单位时间后的时刻 的频率为 。这里 为正整数,采用离散时间。假设在种群 2 中,除了个体迁移外,没有其他因素改变等位基因 的频率。回答(1)、(2)。
(1)用 、、 表示 。
(2)用 、、、 表示 。
问 9. 随着时间推移(),预计种群 2 中等位基因 的频率将接近 。但受遗传漂变影响,该频率也可能取 以外的值。图 2 假设 、,通过包含遗传漂变效应的理论计算,给出了平衡状态下种群 2 中等位基因 频率的概率密度分布(平衡频率分布)。图中横轴为等位基因频率,纵轴为概率密度。(ア)、(イ)、(ウ)中,哪一个假设了最大的种群规模?并用约 3 行说明理由。
Kai
問1
- 機能喪失:一方に機能を損なう変異が蓄積し、偽遺伝子化して失われる。
- 機能分化:変異の蓄積により新機能を得る、または祖先機能を分担する。
問2
オルソログを用いる。オルソログは種分化で分かれた相同遺伝子なので種系統を反映するが、パラログは遺伝子重複で分かれた別コピーである。
問3
動物の共通祖先は既に豊富な遺伝子・ドメインをもっていたと考えられる。ショウジョウバエと線虫ではその後の系統特異的な喪失や急速な配列変化が多く、イソギンチャクでは祖先型が比較的よく保存された。
問4
(ア)はゲノム上の存在に反する。(イ)を節足動物の共通祖先での獲得・継承と解釈する最節約的な進化モデルでは、アブラムシ系統だけでの獲得に反する。この解釈では
ただし、単系統性だけから水平伝播の方向や回数は一意に決まらない。他の節足動物がもつ遺伝子からアブラムシへの水平伝播なども許せば、(イ)を論理的に排除するには追加の仮定が必要である。
問5
アブラムシ2種は距離 、真菌2種は でまとまり、両群は平均距離 で結合する。以後 Staphylococcus、Pantoea、Arabidopsis の順に結合する。(ア)と(ウ)は枝を回転させた同じ系統関係なので
問6
アブラムシ2種の分岐前、その共通祖先が真菌から を獲得したと考えられる。例えば、アブラムシに共生・寄生する真菌や、餌植物上で接触する真菌からの移動が考えられる。ただし、この系統樹だけでは具体的な生態関係を特定できない。
問7
問8
したがって
より
問9
集団が大きいほど遺伝的浮動が弱く、アレル頻度は移住で定まる の近くに強く集中する。